
Биохимия
Сигнал-индуцированное рекрутирование и отправка в реконфигурируемых сетях фазово-разделённых протоклеток
Построение протоклеточных сетей с саморегулируемой пространственной динамикой и функциями — важная задача развивающейся области системной химии коллоидов. Авторы демонстрируют химические стратегии спонтанной сегрегации и селективной транслокации бинарных и тернарных популяций содержащих ферменты протеиносом в водной фазово-разделённой среде (капли декстрана в полиэтиленгликоле) и используют фазовую динамику протоклеток для пространственно-временной модуляции активности DNase I.
Существующие стратегии, как отмечают авторы, в основном дают протоклеточные сети с фиксированной или случайно распределённой пространственной организацией, опираясь на прямые поверхностные взаимодействия или внешне задаваемые условия и в значительной мере игнорируя динамические взаимодействия с окружающей средой, что ограничивает возникновение реконфигурируемого поведения сети. В представленной работе сегрегированные протеиносомы обладают настраиваемой смачиваемостью мембраны, обмениваются химическими сигналами между сообществами и под действием сигналов меняют фазовую совместимость, образуя реконфигурируемые сети, способные к протоклеточно-опосредованному рекрутированию и отправке (dispatchment). По словам авторов, методология даёт платформу для разработки протоклеточных сообществ с саморегулируемым пространственно-временным порядком и открывает возможности в цитомиметическом моделировании и системной химии коллоидов.
Пространственная сегрегация живых клеток в функционально интегрированные сети — отличительный признак биологической организации, лежащий в основе таких процессов, как самоорганизация тканей и паттернирование микробных сообществ. Такие пространственно структурированные системы обеспечивают скоординированную межклеточную коммуникацию и динамические взаимодействия клеток со средой, необходимые для возникновения коллективного поведения, адаптивной функциональности и пространственной организации высокого порядка. Абстрагирование этих биологических процессов в сегрегированные популяции протоклеток с сигнал-чувствительными цитомиметическими свойствами — экспрессией генов, хемомеханической отзывчивостью, морфологической дифференцировкой, структурной гибридизацией — является важным шагом к интерактивным сетям жизнеподобных объектов, способных к химической коммуникации, коллективному движению и синтетической мультиклеточности.
Смешанные и взаимодействующие популяции протоклеток можно пространственно упорядочивать акустическими полями давления и микрофлюидными ловушками либо агрегировать в кластеры (прототкани) посредством комплементарных поверхностных взаимодействий, магнитных полей, микрофлюидики и трёхмерной печати. Однако получаемые сети часто демонстрируют лишь низкий уровень дифференциации из-за фиксированного пространственного положения и однородного распределения составляющих протоклеток. Аналогично, множественные популяции протоклеток в интерактивных гидрогелевых матрицах оказываются случайно перемешанными и пространственно иммобилизованными, что ограничивает их способность к пространственно-временной реорганизации. Таким образом, построение динамических протоклеточных сетей, в которых субпопуляции спонтанно сегрегируют в пространственные структуры, способные к внутренней реконфигурации, остаётся сложной задачей.
Чтобы решить эту задачу, авторы предлагают химическую стратегию программируемой самоорганизации и сигнал-индуцированной транслокации в сегрегированных протоклеточных сетях, размещённых в водных фазово-разделённых средах. Ранее были продемонстрированы механизмы сортировки протоклеток на основе селективной мембранной адгезии, микрофлюидного распределения в Janus-частицах гидрогеля, селективного смачивания в коацерватных каплях и различных скоростей коалесценции в собирающихся цепочках коацерватных капель. В данной работе в качестве платформы для сегрегации и последующей реконфигурации фазово-разделённых протоклеточных сетей использована водная двухфазная система (ATPS), состоящая из обогащённых декстраном капель в непрерывной фазе полиэтиленгликоля (ПЭГ). Активируя фермент-опосредованные сигнальные процессы, авторы стремились достичь программируемой реконфигурации сетей за счёт селективной фазовой транслокации субпопуляций, что позволяет пространственно-временную функциональную модуляцию внутри протоклеток.
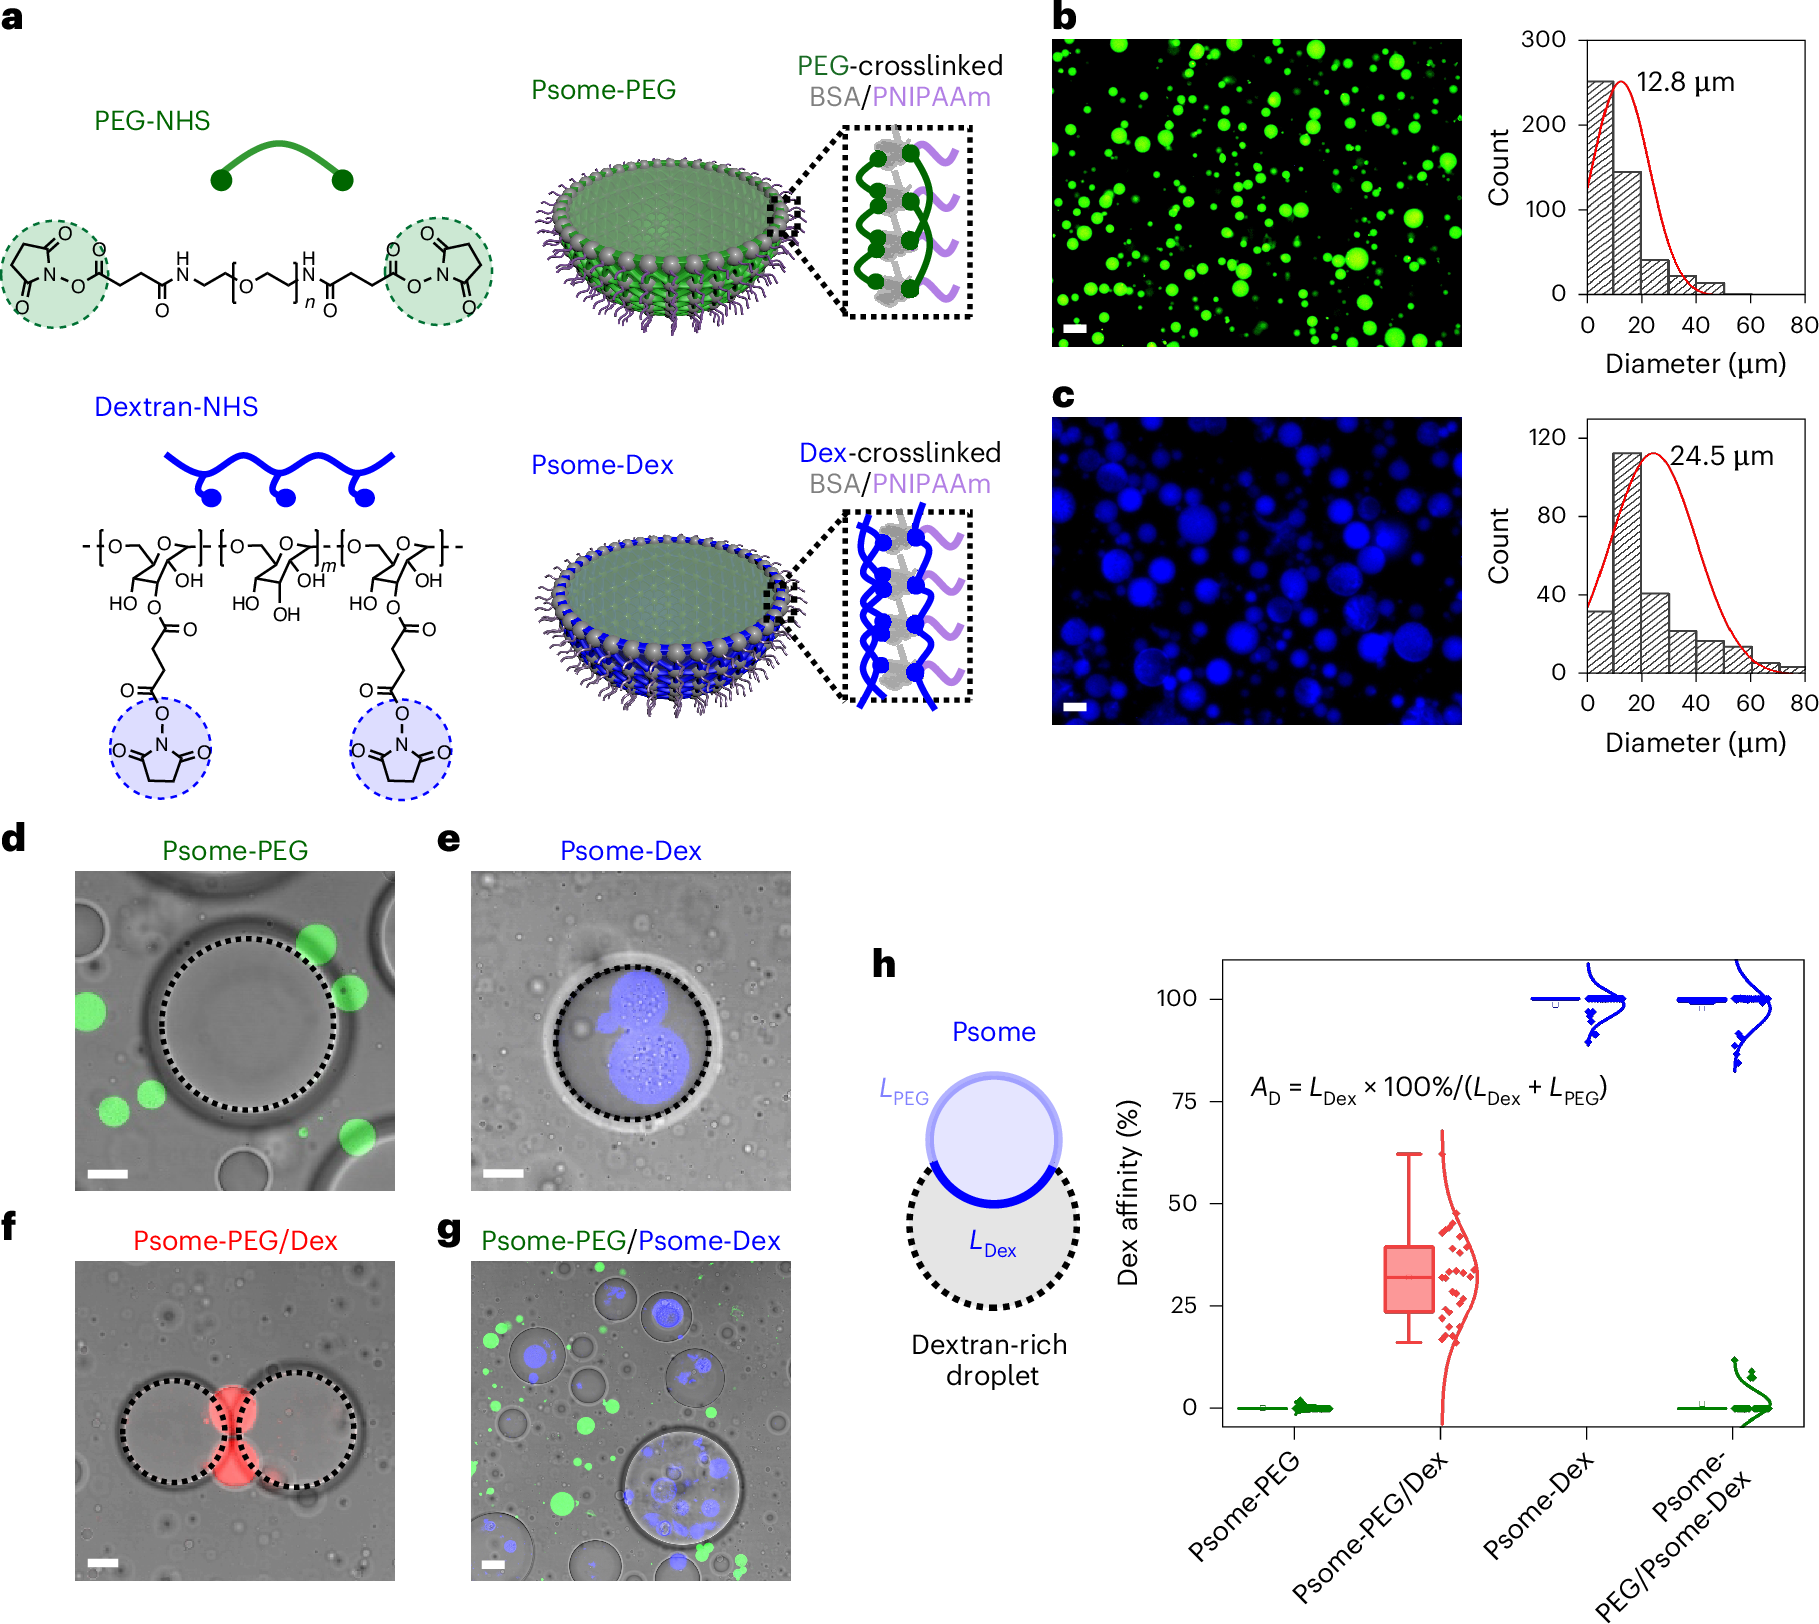
Водную двухфазную систему из лишённых мембраны обогащённых декстраном капель, диспергированных в обогащённой ПЭГ непрерывной фазе, готовили вортексированием смеси полисахарида (декстран; ~35 мг/мл, молекулярная масса 35–45 кДа) и полимера (ПЭГ, ~104 мг/мл, молекулярная масса 35 кДа) при 1000 об/мин в течение 30 с при комнатной температуре. Полученные декстрановые капли были неоднородны по размеру (средний диаметр 25,2 ± 19,4 мкм; диапазон 10–75 мкм) и коалесцировали в течение 30 мин с образованием объёмной фазы при отсутствии постоянного перемешивания. Протеиносомы готовили, как описано ранее, спонтанной самосборкой и сшиванием амфифильных наноконъюгатов бычьего сывороточного альбумина (BSA) и поли(N-изопропилакриламида) (PNIPAAm) на границе раздела содержащих ферменты водных капель и масла с последующим переносом полупроницаемых протоклеток и захваченных биокатализаторов в воду.
Для построения протоклеток с смачиваемостью, совместимой либо с ПЭГ-, либо с декстран-обогащёнными доменами ATPS, использовали соответственно NHS-активированный ПЭГ-полимер (PEG-NHS; молекулярная масса 2 кДа) или NHS-активированный карбоксилированный декстран (Dex-NHS; молекулярная масса 40 кДа; мольная доля NHS 10%), которыми сшивали мембрану BSA/PNIPAAm посредством аминирования между первичными аминогруппами BSA-доменов мембраны и NHS-эфирными группами сшивателей. Обе процедуры давали водные дисперсии интактных сферических протеиносом, заключённых в мембрану, диаметром 12,8 ± 10,2 мкм (Psome-PEG) или 24,5 ± 15,5 мкм (Psome-Dex). Измерения дзета-потенциала показали, что мембраны обоих типов заряжены отрицательно (около −20 мВ при pH 7), а сшитая мембрана полупроницаема с эффективным пределом по молекулярной массе (MWCO) ~70 кДа, что позволяет инкапсулировать ряд различных ферментов.
Добавление отдельных популяций Psome-PEG или Psome-Dex к системе декстран-в-ПЭГ подтвердило различия в смачиваемости протоклеток: на изображениях конфокальной лазерной сканирующей микроскопии (CLSM) конструкции Psome-PEG были диспергированы в непрерывной ПЭГ-фазе, тогда как протеиносомы Psome-Dex преимущественно локализовались в декстрановых каплях. Протоклетки, сшитые смесью PEG-NHS и Dex-NHS, располагались преимущественно на границах капель. Соответственно, добавление бинарной популяции Psome-PEG и Psome-Dex к ATPS при числовых плотностях 1,0 × 10⁷ мл⁻¹ и 0,6 × 10⁷ мл⁻¹ приводило к спонтанной сортировке смеси протеиносом за 10 с при вортексировании или за 30 мин в покое с образованием сегрегированного протоклеточного сообщества, что подтверждено статистическим анализом локализации. В отсутствие перемешивания Psome-PEG в непрерывной ПЭГ-фазе демонстрировали ограниченное броуновское движение, а декстран-сшитые протеиносомы перемещались свободно до контакта с декстрановой каплей, после чего пересекали межфазную границу менее чем за 15 с. Неперемешиваемые системы постепенно коалесцировали в течение 24 ч, образуя объёмную ATPS с сегрегированными популяциями протоклеток.
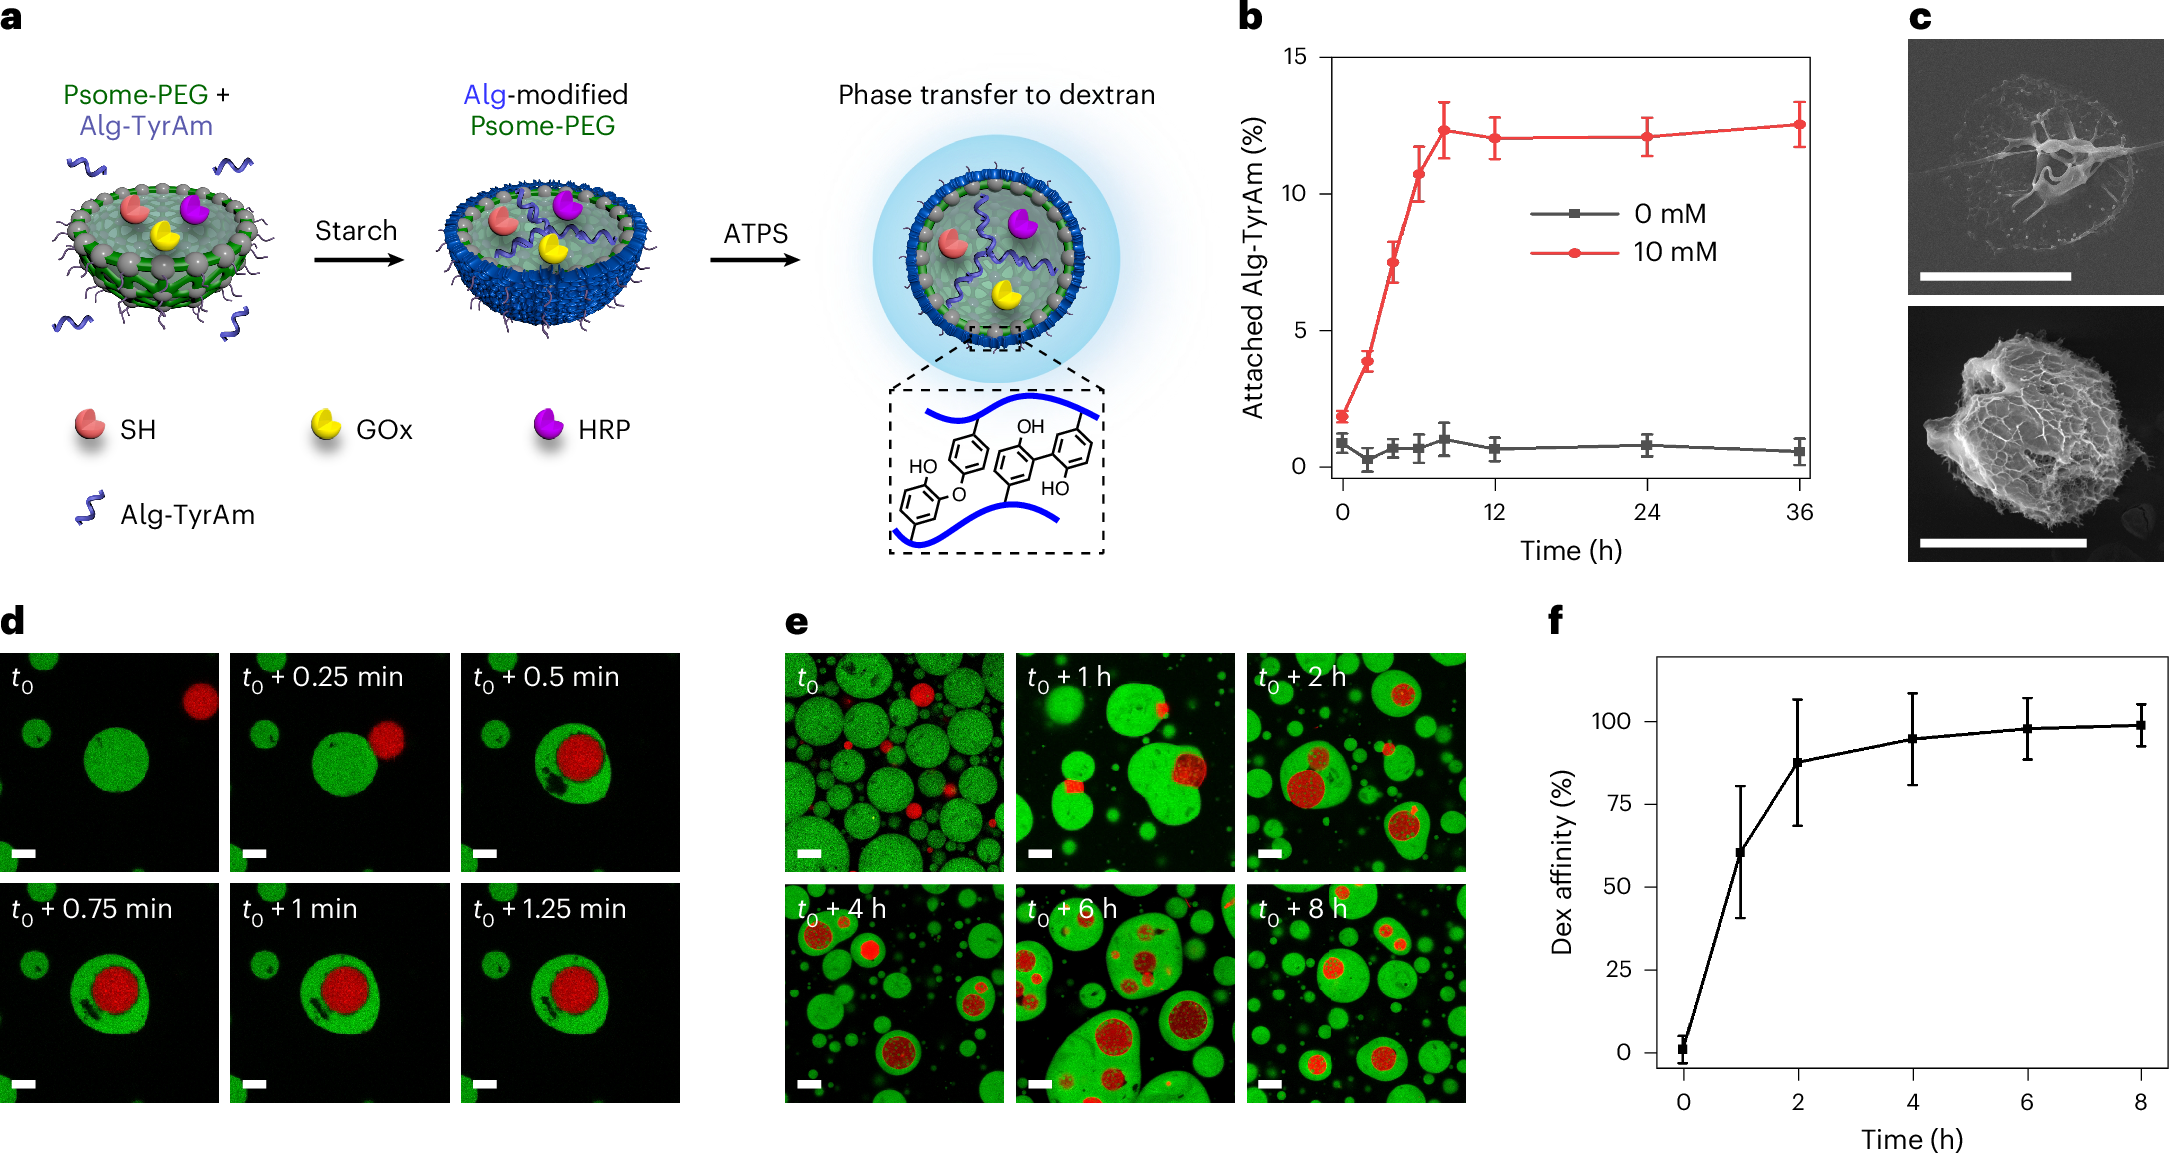
Установив, что включение ПЭГ- или декстран-сшивателей в мембрану протеиносомы при её построении обеспечивает спонтанную пространственную сегрегацию бинарных популяций, авторы использовали инкапсулированный в протоклетки каскад из трёх ферментов — крахмалгидролазы (SH, α-амилаза/амилоглюкозидаза, 50/97 кДа), глюкозоксидазы (GOx, 160 кДа) и пероксидазы хрена (HRP, 40 кДа) — для in situ изменения смачиваемости мембраны. SH превращает введённый крахмал в глюкозу, которая запускает активность GOx внутри протоклеток, давая потоки H₂O₂ и глюконовой кислоты, вызывающие различные изменения фазовой совместимости протоклеток в ATPS. Конкретно, конструкции Psome-PEG, предварительно загруженные SH, GOx и HRP, переводили в декстран-совместимое состояние добавлением растворённого крахмала, инициирующего эндогенную генерацию H₂O₂ в присутствии тирамин-производного альгината (Alg-TyrAm, <1 мг/мл; содержание TyrAm 7% (н/н), молекулярная масса 140–160 кДа) во внешней водной фазе.
HRP/H₂O₂-опосредованное окислительное сшивание Alg-TyrAm формировало полисахаридное покрытие на внешней поверхности мембраны Psome-PEG, а также внутри протоклеток, за 8 ч при мягком вортексировании (600 об/мин). Примечательно, что полимеризация в объёмной фазе дисперсии была минимальной, что указывает на сильное влияние пространственного ограничения HRP на механизм пероксидации. Одна из возможностей, по мнению авторов, состоит в том, что диффузионные ограничения, налагаемые быстрым гашением короткоживущих тирозил-радикалов, обеспечивают протекание полимеризации вблизи инкапсулированных молекул HRP, а не на расстоянии в объёме раствора. Повышение концентрации Alg-TyrAm до 2 мг/мл приводило к кластеризации модифицированных протеиносом. При добавлении к ATPS одиночные и кластеризованные Alg-TyrAm-модифицированные протоклетки Psome-PEG свободно переходили в декстрановые капли, как правило, за 15–30 с после контакта с границей раздела фаз.
На основе этих наблюдений авторы установили эндогенные фермент-опосредованные механизмы спонтанного фазового переноса протоклеток в декстран-ПЭГ ATPS. Транслокация содержащих SH/GOx/HRP протеиносом Psome-PEG из непрерывной ПЭГ-фазы в декстрановые капли достигалась активацией полимеризации Alg-TyrAm внутри ATPS. Хотя крахмал, глюкоза и Alg-TyrAm преимущественно или поровну распределялись в декстрановые капли (коэффициенты распределения K(Dex/PEG): 11,5 для крахмала; 1,1 для глюкозы; 5,0 для альгината), уровня окислительного сшивания в ПЭГ-фазе было достаточно, чтобы изменить смачиваемость мембраны протеиносом, так что Alg-TyrAm-модифицированные протоклетки Psome-PEG постепенно переносились в декстрановые капли.
Чтобы напрямую оценить влияние уровня глюкозы на продукцию H₂O₂ и глюконовой кислоты, авторы исключили ко-инкапсулированную SH, обойдя тем самым начальную SH-опосредованную стадию. Результаты показали, что время, необходимое для полной транслокации всей популяции протоклеток Psome-PEG, последовательно сокращалось с 6 до 2 ч по мере увеличения концентрации добавленной глюкозы при постоянной концентрации Alg-TyrAm (1 мг/мл). Распространение H₂O₂ было эффективным при концентрациях глюкозы вплоть до 3 мМ (фрагмент источника на этом обрывается).